|
|



有丝分裂(mitosis)是真核生物体细胞增殖的主要方式。完整过程是由斯特拉斯伯格(E.Strasburger)和弗莱明(W.Flemming)分别于1880年和1882年在植物和动物中发现。
[6
]
分裂过程中出现了中心体、
纺锤体
、
动粒
和
着丝粒
等有丝分裂器,保证了复制的遗传物质平均地分配给两个子细胞,并诱导胞质分裂。
[1
]
[5
]
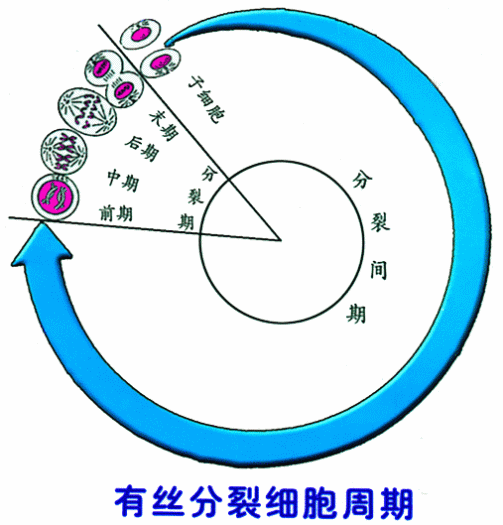
整个有丝分裂可分为分裂间期和分裂期,分裂间期为作为两次有丝分裂之间的关键准备阶段,为细胞分裂的提供重要的物质与能量基础。根据DNA合成特点可划分为三个特征鲜明的阶段:G1期(DNA合成前期)、S期(DNA合成期)和G2期(DNA合成后期)。
[2
]
分裂期则根据细胞核的形态变化可将分裂过程分为前期、中期、后期、末期。细胞周期中,间期占据了绝大部分时间,而分裂期(M期)则相对短暂。
[2
]
- 中文名
- 有丝分裂
- 外文名
- Mitosis
- 别 名
- 间接分裂
- 分裂间期
- 三个阶段 G1 S G2 [2 ]
- 分裂机制
- 纺锤体的形成、染色体复制运动 [2 ]
- 界
- 植物界&动物界 [6 ]
- 分裂期
- 前期 中期 后期 末期 [2 ]
研究历史
播报
编辑
显微镜技术的突破性发展为有丝分裂现象的发现提供了关键的研究工具,标志着细胞分裂机制研究的开端。1841年,罗伯特(Robert Remak)通过对鸡胚胎有核红细胞的系统观察,首次完整记录了细胞核分裂产生两个子细胞核的全过程,
[12
]
这一开创性发现不仅为细胞分裂理论提供了直接的实验证据,更确立了细胞核在分裂过程中的核心地位,为后续有丝分裂机制的深入研究奠定了坚实基础。
[6
]
1842年,卡尔一魏海姆(Karl Wilhelm Von Nageli)发现在分裂过程中,百合和紫露草的细胞核被一些微结构所替代,这些微结构极其微小,且存在时间很短。
[6
]
1848年,霍夫迈斯特(W.Hofmeister)通过碘液染色证实了卡尔提到的微结构(后被命名为
染色体
)的存在,
[12
]
并在1849年出版的专著中详细记录了在紫露草、西蕃莲科和松树中观察到的有丝分裂过程。
[6
]
1871年,柯瓦莱夫斯基(Kowalevski Alexander)通过研究线虫及其他节肢动物的胚胎发育过程,绘制了动物细胞纺锤体和染色体在有丝分裂后期的结构图。1875年,苏黎世病理研究所教授冯·韦特斯基首次详细地记录了在分裂前期细胞核的结构变化。
[6
]
1877年,费莱明(W. Flemming)首次提出染色体"纵向分裂"假说并在1879年尝试将有丝分裂划分为8个阶段,虽因阶段界限模糊未被采纳,但为后续研究奠定了基础;1880年,施特拉斯布格(E. Strasburger)在《细胞的形成和分裂》中首次论证了动植物有丝分裂过程的高度统一性,1882年,费莱明发表的《细胞成分、细胞核和细胞分裂》系统阐述了动物细胞有丝分裂机制;在术语体系的构建上,施特拉斯布格于1884年首次使用'prophase'(前期)、'cmetaphase'(中期)和'anaphase'(后期)来描述分裂过程的不同阶段,1894年,海登汉(R. Heidenhain)团队补充'telophase'(分裂末期)概念,由此确立四期划分法;1913年伦德(H. Lundegårdh)引入'interphase'(分裂间期)概念,最终形成包含分裂间期和分裂期的完整有丝分裂周期理论框架,这一系列重要发现使人类对细胞分裂过程的认识产生了质的飞跃。
[6
]
20世纪50年代,电子显微镜首次揭示了有丝分裂器,包括核膜、纺锤体微管和着丝粒等。70-80年代,发现了调控细胞周期的关键分子
周期蛋白
(cyclin)-
周期蛋白依赖性激酶
(CDK)系统。21世纪超高分辨率显微镜(10-30nm)实现了活细胞分裂过程的纳米级动态观测。
[12
]
细胞周期
播报
编辑
 有丝分裂
分裂间期
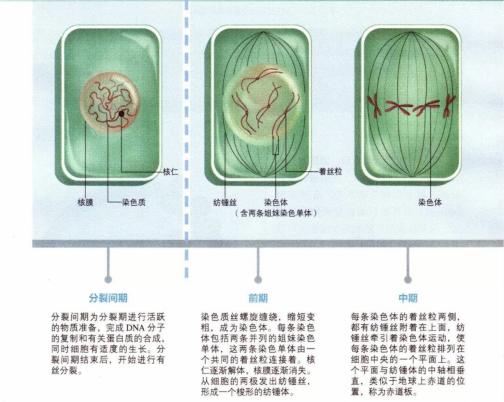
细胞分裂间期是两次有丝分裂之间的关键准备阶段。在光学显微镜下,细胞核均质,染色体不可见。此时,染色体处于高度解螺旋化的水合凝胶状态,折射率与核质相近。
[2
]
[8
]
细胞有丝分裂的过程
(2张)
细胞分裂间期根据DNA合成特点可划分为三个特征鲜明的阶段:G1期(DNA合成前期)、S期(DNA合成期)和G2期(DNA合成后期)。S期通常持续时间最长且相对稳定,而G1期和G2期则相对较短且具有更大的可塑性。
[2
]
[8
]
G1期作为细胞周期首个间隙阶段,主要承担细胞生长和大分子物质(包括多种蛋白质)的合成任务,为后续DNA复制奠定物质基础。值得注意的是,处于静止状态的细胞会长期停滞在G1期(即G0期),部分细胞还会合成特定的抑制素来维持这种静止状态。
[2
]
[8
]
S期作为遗传物质复制的关键窗口期,通过精确的DNA半保留复制使细胞DNA含量实现倍增。
[2
]
[8
]
G2期负责合成引导细胞进入分裂期的关键调控蛋白,为有丝分裂做好最后准备。
[2
]
[8
]
分裂期
前期
 有丝分裂前期
中期
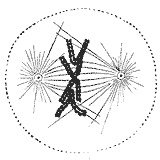 有丝分裂中期
后期
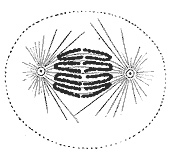 有丝分裂后期
末期
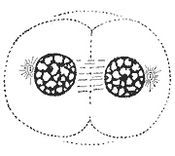 有丝分裂末期
有丝分裂器
播报
编辑
有丝分裂过程依赖于中心体、动粒、着丝粒和纺锤体等结构,这些结构统称为有丝分裂器(mitotic apparatus)。
[4
]
中心体
中心体是由一对相互垂直排列的中心粒及其周围的无定形基质组成的亚细胞结构。每个中心粒呈圆筒状,其管壁由9组三联
微管
规则排列构成。在细胞的分裂间期,中心体作为微管组织中心,能够引导微管蛋白聚合形成星状放射的微管阵列,这些星体微管为后续纺锤体的组装提供结构基础。而中心体在细胞周期中需要经历精确的复制过程,被称为中心体循环,其复制时机与DNA复制相协调,共同确保细胞分裂的正常进行。
[4
]
纺锤体
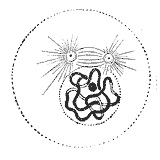
纺锤体作为动植物细胞有丝分裂过程中临时形成的动态结构,呈现典型的双极纺锤形态,其两极各有一个星体结构,中部由动粒微管和极性微管系统组成:动粒微管一端锚定星体,另一端特异性连接染色体动粒,直接介导染色体的分离;极性微管则从星体延伸而出,在赤道区相互重叠搭桥,维持纺锤体的结构稳定性。这种精密的微管空间排布从前期开始组装,中期达到完全形态,后期发生解聚,最终在末期消失,整个动态过程为姐妹染色单体的精确分离提供了必要的机械力基础,任何组装异常都可能导致染色体分离错误和非整倍体的产生。
[4
]
动粒和着丝粒
着丝粒-动粒复合体作为染色体分离的核心功能单元,由位于染色体主缢痕区的特化染色质(着丝粒)及其表面附着的盘状动粒结构共同组成。电镜观察显示动粒具有三层超微结构:内层(约50nm厚)由着丝粒染色质构成,中层(约30nm厚)含纤维桥连网络,外层(约50nm厚)为细纤维网状结构并附着20-30根动粒微管。在分裂中期,每条染色体的着丝粒两侧各形成一个动粒,这种双向排列结构既能高效捕获纺锤体微管,又能将染色体准确连接到双极纺锤体上,同时参与纺锤体检验点信号传导。
[4
]
意义
播报
编辑
在有丝分裂中,染色体仅复制一次,细胞随后进行一次分裂,最终实现染色体精确分配到两个子细胞核中,从而确保子细胞获得与母细胞完全相同的遗传物质。这一机制不仅维持了生物个体的正常生长发育,也保障了物种遗传的连续性和稳定性,
[11
]
这一机制也使得植物可以通过无性繁殖保持母体遗传性状。
[2
]
在有丝分裂过程中,线粒体和叶绿体等细胞器虽然能够通过复制增加数量,但由于它们在细胞质中分布不均匀且数量不恒定,导致在细胞分裂时这些细胞器被随机且不均等地分配到子细胞中。因此,由这些细胞器决定的遗传表现无法像染色体遗传那样具有规律性。
[2
]
动植物差异
播报
编辑
动物和植物细胞的有丝分裂过程大体相同,只在细节上有所差异。
[3
]
两者最大的差异集中于有丝分裂前期,在动物细胞中,中心体经过复制形成两个中心粒并分别向细胞两极迁移,其周围辐射出大量星射线(astral rays),这些星射线与两极之间的纺锤丝共同构建成完整的纺锤体结构;而大多数植物细胞由于缺乏中心体结构,其纺锤体形成不依赖星射线,而是通过其他微管组织机制完成组装。
[3
]
[10
]
在细胞有丝分裂末期,动物细胞通过细胞膜内陷完成分裂,而植物细胞则通过形成细胞板进而构建细胞壁实现分裂。M期的持续时间因物种而异,典型植物细胞(如
鸭跖草
)约1-2小时,而动物细胞(如
果蝇
)M期显著较短。植物细胞各阶段持续时间相对均衡,而动物细胞的前期和中期较短,末期相对较长,这种时间差异反映了不同物种细胞周期调控的适应性特征。
[3
]
特殊情况
播报
编辑
多核细胞
在细胞异常分裂过程中,当细胞核经历多次重复分裂而细胞质未同步分裂时,会形成含有多个游离细胞核的多核细胞。这种现象在病理状态下尤为显著,例如在白血病患者的血液样本中,常可观察到这种多核的肿瘤细胞。
[2
]
[9
]
核内有丝分裂
核内有丝分裂主要表现为两种不同的形式:第一种是染色体完成复制和分离,但核膜保持完整,导致染色体数目加倍的细胞核形成,常见于体外培养细胞和植物花药
绒毡层
细胞;第二种是染色质反复复制但染色体不发生分离,形成多线染色体的特殊结构。
[2
]
[9
]

