|
|



人属(学名:
Homo
)是
人亚科
下的一属,仅存一种,即
智人
Homo sapiens
,
形态特征
比直立人更为进步。分为早期和晚期智人。早期智人过去曾叫古人,主要特征是
脑容量
大,在1300毫升以上;眉嵴发达,前额较倾斜,枕部突出,鼻部宽扁,颌部前突。晚期智人过去曾叫新人,是解剖结构上的现代人。两者形态上的主要差别在于前部牙齿和面部减小,眉嵴减弱,颅高增大,到现代人则更加明显。在晚期智人阶段,人种形成。直立步行,臂不过膝,体毛退化,手足分工,
下颌骨
浅且粗壮,大脑极为发达,有语言和劳动,有
社会性
和
阶级性
。
[1]
分布于世界所有大洲,早期类型仅分布于亚洲、
非洲
和欧洲的温暖地区。
[1]
人属是一种杂食、群居的陆地两足动物,拥有一系列与双足行相适应的骨骼和肌肉,包括失去,抓握能力的脚部结构。这一物种减少了身体大部分的毛发覆盖。雌雄异体,在体型上表现出中等程度的性二态性,体内受精,胎生,妊娠期平均为40周,能够全年繁殖。智人为单一物种,并无现存亚种,物种内部不存在生殖隔离。相较于其他猿类,智人拥有显著增大的大脑,并且能够借助复杂的语言进行沟通、交流等活动;能够使用并控制火,以及加工并且使用各种复杂的工具。
[54
]
该种群分布广泛,适应性强,日益增加,并且没有导致总体数量下降的主要威胁。在世界自然保护联盟(IUCN)2008年《濒危物种红色名录》中,智人被列入“无危”一级。
[54
]
动物学史
播报
编辑
-
进化
人属从南方古猿进化而来,以下这些都属于人属:
人类起源于非洲,这一点已经没有异议。不同学说争论的焦点是现代人类什么时候从非洲扩散到世界其他地方的。多地区起源学说认为从100多万年前开始从非洲扩散到欧亚大陆的直立人各自继续独立进化,分别在欧洲、亚洲和非洲进化成现代人,并形成现代的主要人种。这一理论的根据是化石记录。比如一些中国学者认为在中国大陆发现的不同年代的猿人化石形态上具有连续性,呈现一种持续的形态变化,并具有与现代黄种人相似的某些特性。非洲起源学说则认为智人在20万年前还局限于非洲,在10万年前向世界各地扩散,完全取代了其他地区的古人种,包括直立人,成为现代人。现代分子生物学的研究表明,非洲起源学说是正确的。
[10
]
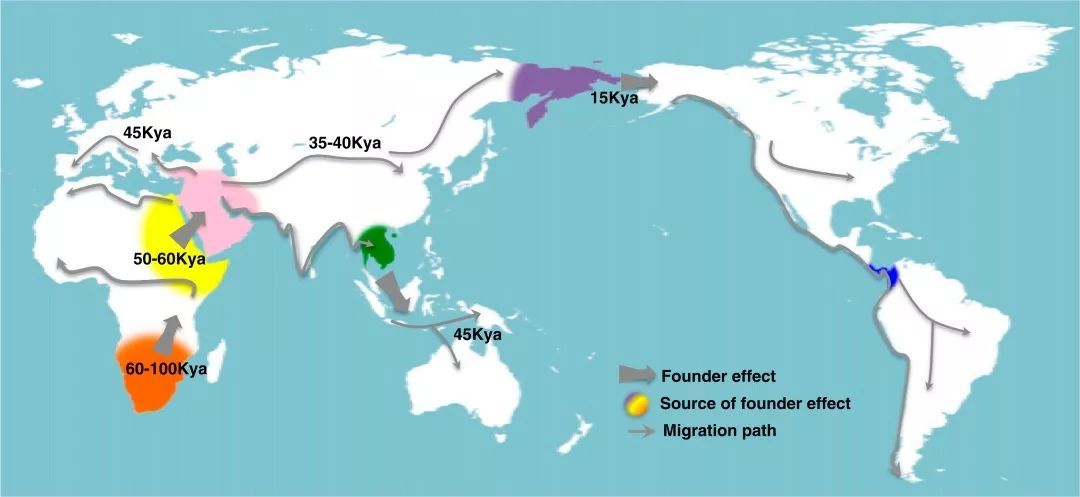 现代人走出非洲之后向欧亚大陆扩散的路线图
DNA记录显示智人在4万-5万年前由印度经东南亚进入中国,逐渐演变为华夏民族,但是发现的遍布中国大地的许多古人类的年代远早于4万年,例如云南发现的元谋人生存于上百万年前,北京周口店猿人也生活在50万-30万年前;这些猿人的子孙都去哪儿了,和现在中国人的关系是什么。在中国所发现的主要古人类化石,它们存在的时间和地点。在距今10万年到4万年之间几乎没有古人类化石出土。一般来讲,越是靠近现代,能够存留的遗骨或化石应该更多才是,因此这一缺位是不同寻常的。合理的解释是在10万年前,由于某种原因,位于中国的所有古人类都灭绝或迁徙了,直到智人在5万-4万年前进入中国大陆填补了空白。究其原因,可能与距今5万-10万年前的第四纪冰川有关。那一时期地球变冷,冰川自北极向南移动,覆盖了东亚地区,使得这一地区绝大多数生物种类灭绝,古人类也不例外。这种情况也出现在世界其他地区,比如欧洲,也导致那里的尼安德特人数量大大减少。而当时生活在温暖的非洲和中东地区的智人没有受到明显影响。在冰川期结束后现代人随着温暖气候的北移,和其他动植物一起进入中国大陆,成了这块领地的新居民。因此包括元谋人、北京猿人在内的直立人并不是我们的直接祖先,但可以比喻为现代全人类的旁系近亲。
[10
]
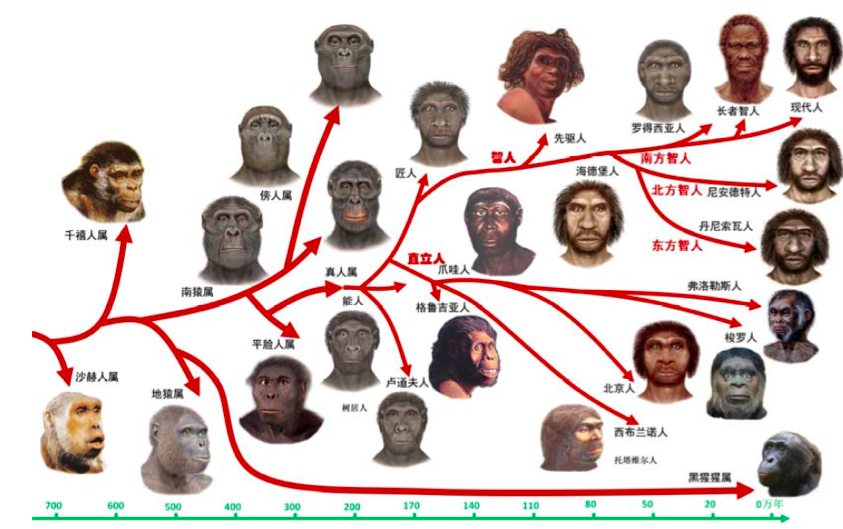 人属进化树状图
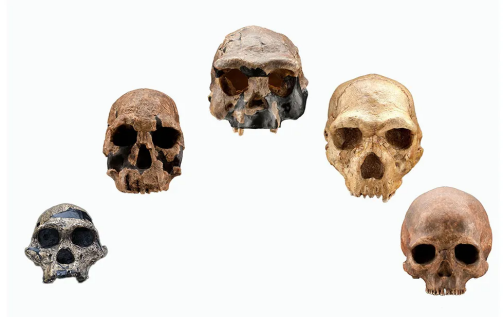 大约250万年前的非洲南方古猿到右边大约4800年前的智人
大约200万年前,在南猿和人属的交替时期,非洲大地又一次面临长期干旱,雨量减少,雨林进一步萎缩,变成疏林,疏林则变成热带稀树草原。人类祖先被迫离开疏林,走到热带稀树草原去觅食。这意味着他们放弃了树栖生活,不再爬树,完全用双脚在草原上活动了。草原上有许多食草动物,也有一些小型哺乳动物,成了人类肉食的来源。为了获取这些肉食,人类发明了石器,也演化出更完美的双足行走和跑步,去掠夺草原上的动物尸体,或追杀那些硝物。肉食也促进了人类的合作,改变了男女的关系。
[52
]
-
1.
早期猿人:距今100万-250万年。例如能人在20世纪50-60年代被发现于东非的坦桑尼亚。特点是颅骨较发达、平均脑容量650毫升,牙齿比南方古猿小,能制造石器。能人是最早的人属成员,仅见于非洲。 [10 ]
-
2.
晚期猿人:距今24万-150万年,例如直立人。直立人首先被发现于爪哇岛,此后在亚洲其他地区、欧洲、非洲等地都有发现。在我国发现的直立人化石有北京人、元谋人、蓝田人等。其中1929年发现的北京直立人生活在距今20万-50万年前。平均脑容量为1089毫升。直立人已经开始用火,能够制造复杂的石器工具。 [10 ]
-
3.
早期智人:距今4万-25万年。早期智人的代表是尼安德特人,生存年代为3万-25万年前,广泛分布在欧洲和亚洲西部。尼安德特人身高1.5-1.6米,颅骨容量平均为1500毫升,较现代人的平均脑容量1350毫升还要大些。尼安德特人的骨骼和肌肉强健,四肢粗大,牙齿也大,胸部较宽,手和脚也比较大;比现代人有着耐寒的体格;肤色估计是浅色的。早期智人能制造较复杂的石制工具和用于狩猎大型野兽的木制长矛,并能用兽皮制作简陋的衣服,会取火。尼安德特人有制造首饰、具有原始宗教、埋葬死者的文化习俗。 [10 ]
-
4.
晚期智人即现代人种,简称智人。发现于法国南部的克鲁马努人,我国的山顶洞人等都属于晚期智人。他们最终发展成现代人。 [10 ]
-
智人的起源和迁徙
智人是人属中的一支。这里首先强调,人属是许多人类近亲物种的集合,但并不是每个人属生物都会进化为现代人。人类并不是人属生物进化的必然结果。每一种人属生物都在特定的环境条件下生活,它们的进化方向都是朝向适应这一环境而发展。智人在自身的生活环境压力下进化,才最终发展出人类文化,成为现代人。对于黑猩猩、能人、直立人,乃至尼安德特人。即使让它们在没有人类干扰下继续进化,进化成为现代人的机会也是非常小的。
[10
]
另外,依据进化论的基本原则,在探索人类起源时要记住一个前提,即人类是一个生物物种,只能有一个共同祖先,不可能是多个祖先物种平行进化,并都演化成现代人类。那种认为欧洲人、亚洲人、非洲人在各自大陆独立地由当地类人猿进化,成为现代的白种人、黄种人、黑种人的观点不符合生物学原理。甚至人种(race)的概念也没有科学意义,现在世界上所有的人都属于一个物种:智人。
[10
]
现代人走出非洲之后向欧亚大陆扩散的路线图
人属进化树状图
形态特征
播报
编辑
可以通过醒目扩大的大脑区别于其它活的猿,相对减少了身体大部分的毛发覆盖,有一系列能与惯用的双足动作相适应的骨骼和肌肉,包括失去抓握能力的脚部结构。人类是陆地
两足动物
,游泳和潜水的能力有限,必须学习。该物种在身体尺寸和比例方面表现出强烈的变化,并且色素沉着,其中一些可能与所处的广泛环境有关。在体型上表现出中等程度的
性二态性
。
[1]
栖息环境
播报
编辑
人属可以在各种各样的栖息地中找到。如生活在地形错综复杂的环境里,包括稀树草原、稀树森林,还有河流沿岸的走廊式森林,这归功于其利用技术来适应和修改栖息地的能力。
[49-50
]
分布范围
播报
编辑
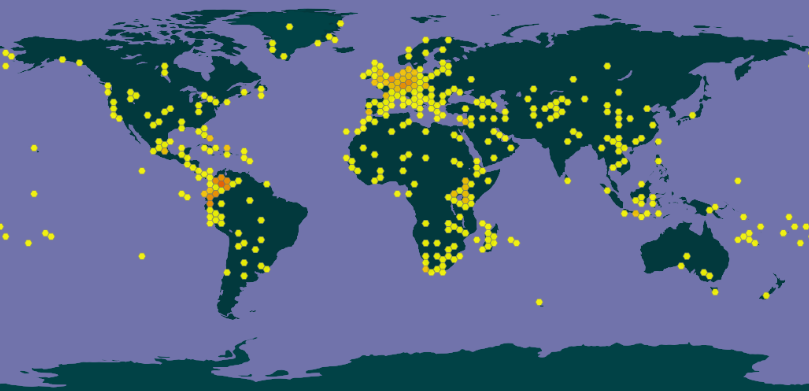
生活习性
播报
编辑
大约250万年前的非洲南方古猿到右边大约4800年前的智人
南方古猿食素,以树叶、果实、地下块茎和种子为生;人属物种同样采集并食用植物,但它们还要吃肉,最有可能的途径是分享其他狩猎者吃剩的大型动物残骸,有时也靠自己捕获一些小动物来食用。这种变化就好像在演化迷宫中拐进了一条可以通往出口的岔路,最终导致了物种的差别。
[50
]
人与动物有本质的不同。人能制造工具,当然某些非人灵长类也能制造简单的工具,但与人类有根本不同。人可直立行走,有拱形的足底,制造工具的手更加轻巧,脑高度发展,有语言和思维,生理上有第二信号系统,这些都反映了人的文化,是人的社会性,人生活在一定的环境中,不仅能适应环境,受社会、自然环境的影响,又可以改造和破坏环境。
[51
]
起初是劳动,而后是语言和它一起形成了最主要的推动力,猿的脑就逐渐演变成人的脑。后者和前者虽十分相似,但从大小和完善程度来说远远超过前者。人除与动物存在物种上的差别之外,由于人生活的地域不同、时代不同、人的民族/种族不同、性别不同、年龄不同,人与人之间在形态结构、机能代谢、免疫、疾病易感性与体能上也有不同。这些差异的存在,主要是基因与环境相互作用的结果。由于自然环境、社会生态环境的不同,生活方式的差异,影响人的形态与机能。有什么样的形态就有什么样的功能,反过来功能又影响人的形态。人是一个复杂的有机整体,成为一个完整的系统,这个系统具有整体性、相关性、有序性和动态性,既与外界交换能量,又和外界交换物质。从生物学上看,人处于食物链的顶端,既是草食动物又是肉食动物,属于杂食动物,从这个意义上讲,人也是动物中的一员。
[51
]
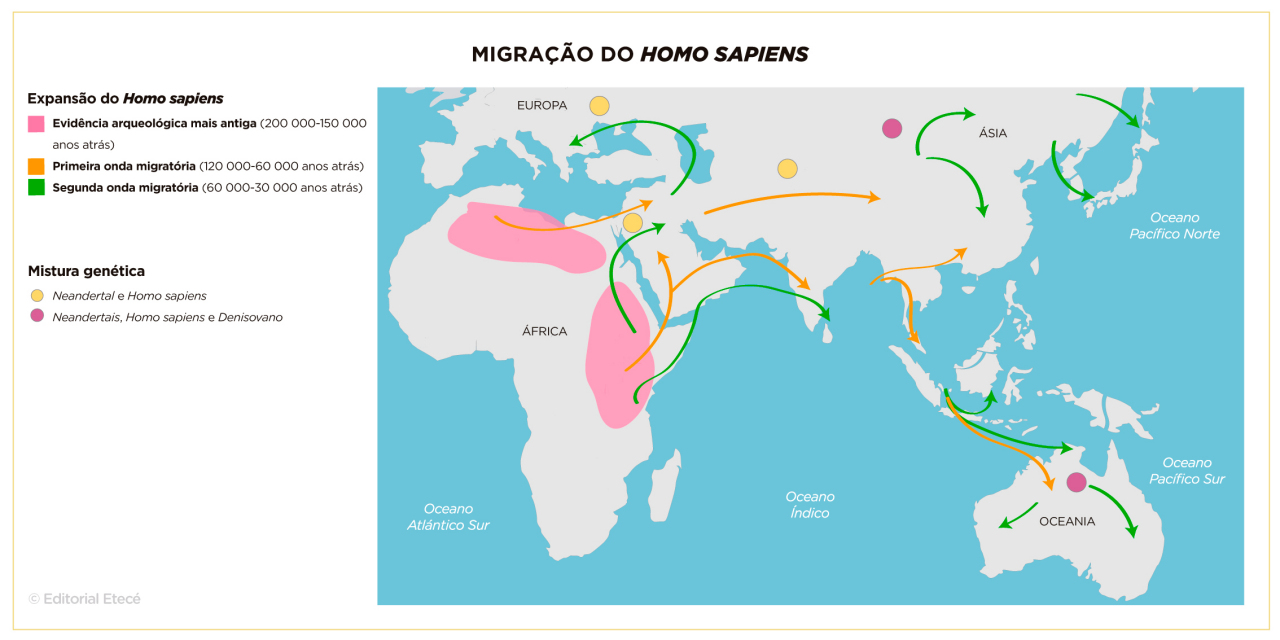 人类迁徙路线
生长繁殖
播报
编辑
能够全年繁殖。
雌雄异体
,
体内受精
,
胎生
,
妊娠期
平均为40周。通常有一个后代产出,虽然双胞胎偶尔出现,但很少有
多胞胎
出生。分娩间隔,
出生体重
,断奶时间,独立性和
性成熟度
都随着母亲和年轻人的
营养状况
而大不相同,并且受到文化习俗的影响。
[53
]
下级分类
播报
编辑
|
名称
|
学名
|
时间(万年前)
|
发现地点
|
图片
|
|
|
最早
|
最晚
|
||||
|
Homo
sp.?
|
280
|
275
|
于2013年在埃塞俄比亚的阿法尔州的Ledi-Geraru研究区出土
[4-5]
|
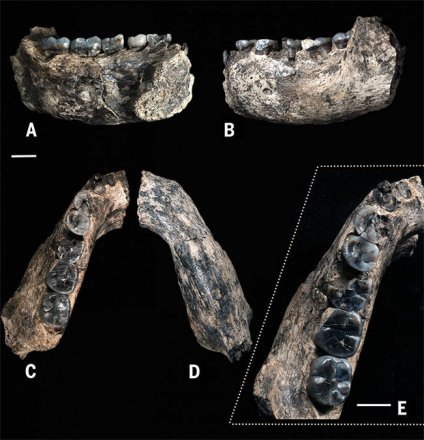 LD 350-1化石
[8] |
|
|
Homo naledi
|
33.5
|
23.6
|
南非豪登省
[6]
[7
]
|
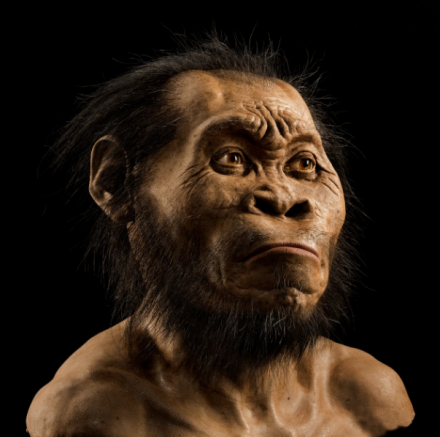 纳莱迪人 |
|
|
Homo rudolfensis
|
240
|
180
|
东非肯尼亚,马拉维
[9]
[11-12]
|
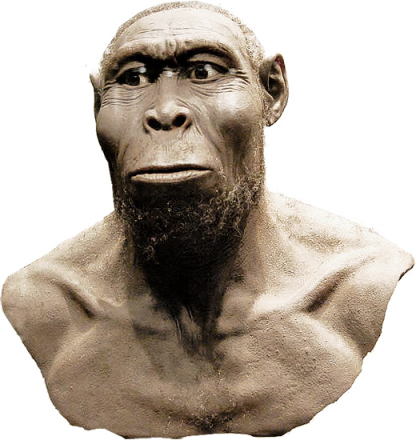 鲁道夫人 |
|
|
Homo habilis
|
240
|
150
|
坦桑尼亚奥杜瓦伊峡谷
[14]
|
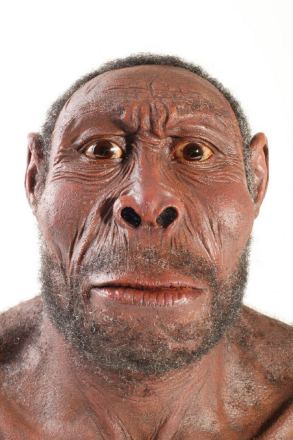 能人
[13] |
|
|
格鲁吉亚原人
|
Homo georgicus
|
180
|
160
|
格鲁吉亚德马尼西
[15-16]
|
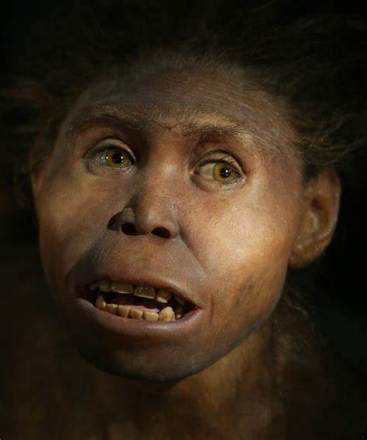 格鲁吉亚原人 |
|
Homo ergaster
|
190
|
140
|
东非,南非,格鲁吉亚
[17-18]
|
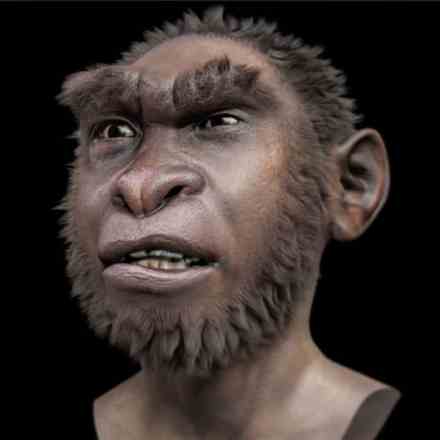 匠人 |
|
|
Homo gautengensis
|
200
|
180
|
南非豪登省
[19-20]
|
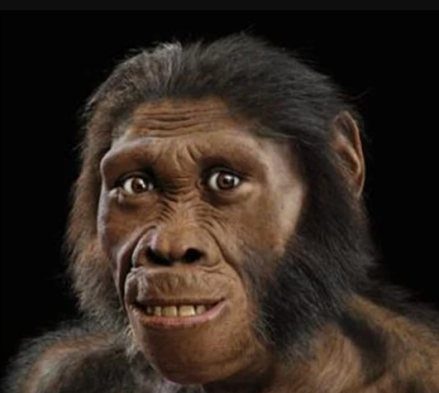 豪登人 |
|
|
Homo erectus
|
170
|
20
|
阿尔及利亚,中国,爪哇
[21]
|
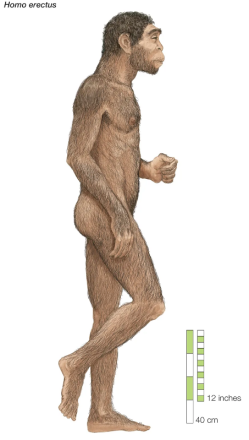 直立人 |
|
|
Homo antecessor
|
120
|
80
|
西班牙布尔戈斯
[22-23]
|
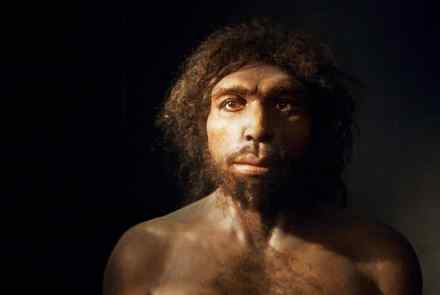 先驱人 |
|
|
Homo cepranensis
|
80
|
意大利弗罗西诺内省
[24-25]
|
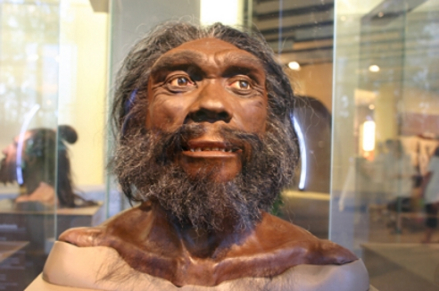 西布兰诺人 |
||
|
Homo bodoensis
|
75
|
13
|
欧洲,南非,东非
[28-30]
|
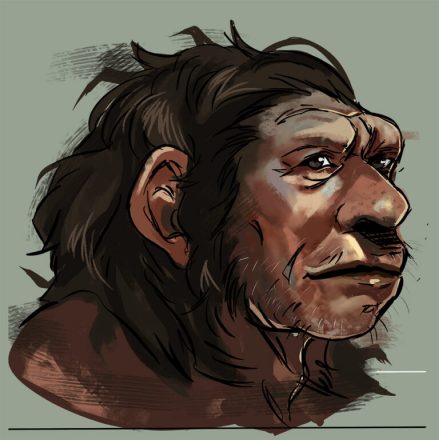 博多人 |
|
|
Homo rhodesiensis
|
60
|
12.5
|
赞比亚,南非,埃塞俄比亚,坦桑尼亚
[26-27]
|
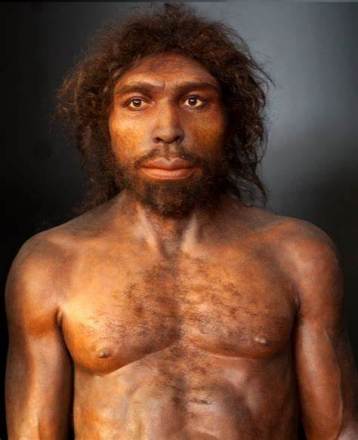 罗德西亚人 |
|
|
Homo heidelbergensis
|
78
|
13
|
欧洲,东非
[31-32]
|
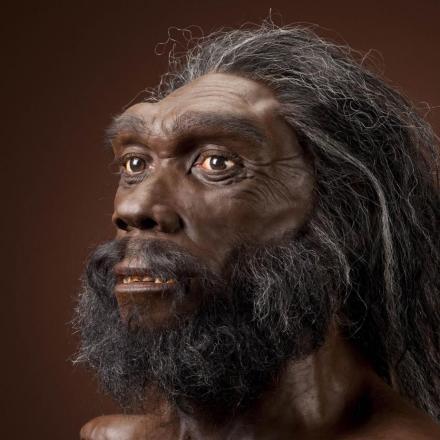 海德堡人 |
|
|
Homo neanderthalensis
|
20
|
3
|
中东,欧洲
[33-34]
|
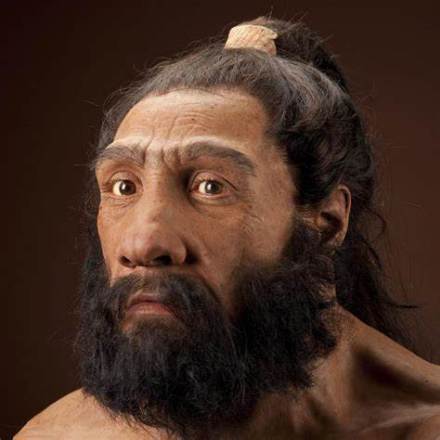 尼安德特人 |
|
|
Homo floresiensis
|
9.4
|
1.3
|
印尼弗洛勒斯岛,东南亚
[35-36]
|
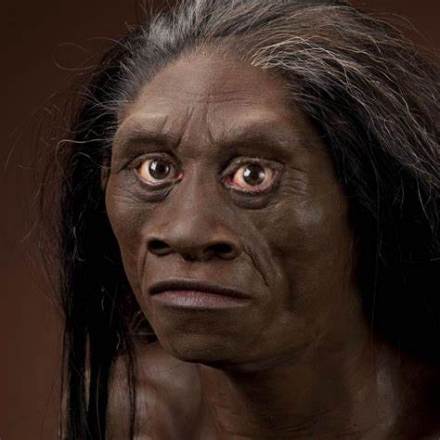 佛罗勒斯人 |
|
|
Homo luzonensis
|
6.7
|
5
|
菲律宾吕宋岛,东南亚
[37-38]
|
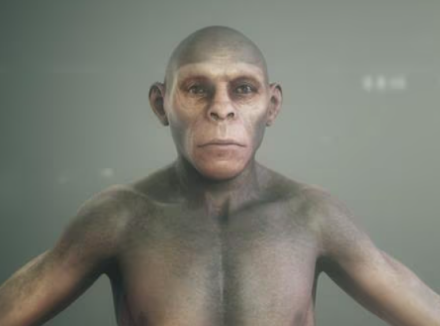 吕宋人 |
|
|
Penghu 1 / Homo tsaichangensis
|
45
|
19
|
中国台湾海峡
[39-40]
|
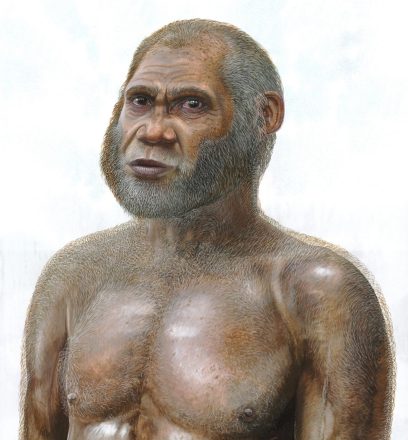 澎湖原人 |
|
|
Homo
sp./
Homo sapiens
ssp.
Denisova
|
16
|
3
|
西伯利亚、青藏高原
[41-42]
|
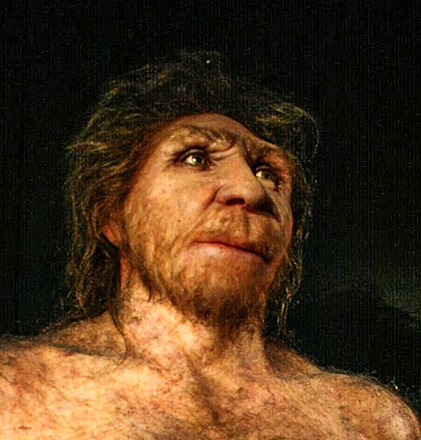 丹尼索瓦人 |
|
|
Homo longi
|
30.9
|
14.6
|
中国黑龙江省
[43-44]
|
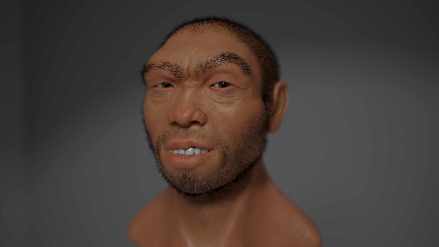 龙人 |
|
|
Homo sapiens idaltu
|
16
|
15.4
|
埃塞俄比亚
[45]
|
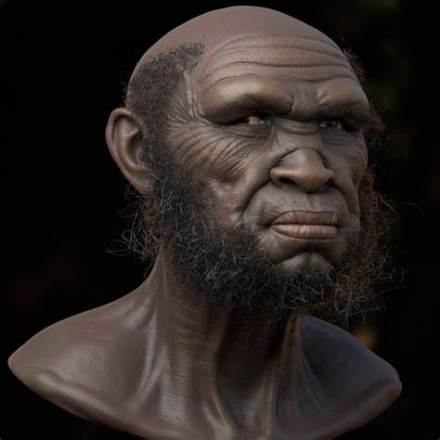 长者智人 |
|
|
Homo
sp.
|
1.43
|
1.15
|
中国广西
[46]
[47
]
|
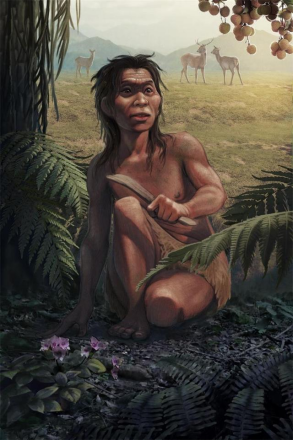 马鹿洞人 |
|
|
巨颅人
|
Homo juluensis
|
20
|
10
|
中国许家窑
[48]
|
|
保护现状
播报
编辑
-
种群现状
该种群分布广泛,适应性强,日益增加,并且没有导致总体数量下降的主要威胁。在世界自然保护联盟(IUCN)2008年《濒危物种红色名录》中,智人被列入“无危”一级。
[54
]

